Pensamento Estratégico de Sustentabilidade para Gerentes de Projetos (Start)
História do pensamento sustentável, Agenda Pós-2030, ODS da ONU e ferramentas de análise climática em projetos.
Especialização biomédica e fisiológica avançada nas bases biofísicas, moleculares e mecânicas do sistema neuromuscular humano, estruturada segundo os modelos clássicos e contemporâneos da eletrofisiologia de membranas, transmissão colinérgica, mecanobiologia do sarcômero e plasticidade funcional ao exercício e desuso. O programa capacita fisioterapeutas, profissionais de educação física, médicos, biomédicos e cientistas do movimento no domínio integral dos mecanismos neuromusculares: 1. Bioeletrogênese e Condução Axonal: equação de Nernst e Goldman-Hodgkin-Katz (GHK), biofísica dos canais de Na+ e K+ dependentes de voltagem no potencial de ação, períodos refratários e condução saltatória nos nodos de Ranvier mediada pela teoria do cabo e constantes de tempo (tau) e espaço (lambda); 2. A Junção Neuromuscular (JNM): ultraestrutura da placa motora, influxo pré-sináptico de Ca2+ por canais Cav tipo P/Q, fusão vesicular pelo complexo SNARE (sinaptobrevina, sintaxina-1, SNAP-25) e sinaptotagmina, liberação quântica de acetilcolina (ACh), ativação do receptor nicotínico pentamérico (nAChR), potencial de placa motora (EPP), cinética de clivagem pela acetilcolinesterase (AChE), bloqueadores neuromusculares farmacológicos (despolarizantes como succinilcolina vs. competitivos como rocurônio) e imunopatologias (Miastenia Gravis com anticorpos anti-nAChR e Síndrome de Lambert-Eaton com anticorpos anti-Cav); 3. Acoplamento Excitação-Contração (AEC): arquitetura sarcomérica (actina, miosina II, complexo troponina-tropomiosina, titina e distrofina), a tríade sarcolemar (túbulo T e cisternas terminais do retículo sarcoplasmático), acoplamento mecânico direto entre o sensor de voltagem DHPR (Cav1.1) e o canal de liberação de Ca2+ RyR1, teoria dos filamentos deslizantes de Huxley com o ciclo quimiomecânico das pontes cruzadas associado ao ATP, relaxamento pela bomba SERCA1/SERCA2 e hipertermia maligna por mutação no gene RyR1 revertida por dantroleno; 4. Unidades Motoras e Recrutamento: conceito de Sherrington, Princípio do Tamanho de Henneman governado pela biofísica neuronal (resistência de entrada e Lei de Ohm), tipagem morfo-funcional de fibras musculares (Tipo I lentas/oxidativas, Tipo IIa rápidas/oxidativas-glicolíticas e Tipo IIx rápidas/glicolíticas) e modulação de força por recrutamento espacial e temporal (rate coding e somação tetânica); 5. Mecânica Muscular e Relações Fundamentais: relação força-comprimento sarcomérica (Gordon, Huxley & Julian) e comprimento ótimo (L0 de 2,0 a 2,2 um), relação hiperbólica força-velocidade de A.V. Hill na geração de potência máxima, ações musculares excêntricas supramáximas, papel elástico da titina e o Ciclo Alongamento-Encurtamento (CAE); e 6. Fadiga e Plasticidade Neuromuscular: diferenciação eletrofisiológica entre fadiga central (drive neural descendente e técnica de estímulo sobreposto / interpolated twitch) e fadiga periférica (falha no AEC e acúmulo de Pi/H+), monitoramento espectral por eletromiografia de superfície (queda da frequência mediana - MDF), adaptações neurais precoces versus hipertrofia sarcomérica por via mTORC1, e mecanismos celulares da sarcopenia e dinapenia no envelhecimento sob as diretrizes da NBR ISO 15189.
Do curso base em Pensamento Estratégico de Sustentabilidade (R$ 29,99) à Liderança Internacional em Projetos de Clima e Captação Global (R$ 199,99).
UPGRADE29) para abater nas Trilhas 2, 3, 4 ou 5!
História do pensamento sustentável, Agenda Pós-2030, ODS da ONU e ferramentas de análise climática em projetos.
Transição energética, bioeconomia, agronegócio regenerativo, Soluções Baseadas na Natureza (NbS) e infraestrutura resiliente.
Resolução CVM 193 (IFRS S1/S2), GRI, CSRD, fronteiras de carbono (CBAM), lei antidesmatamento (EUDR) e ACV/LCA.
Mercado regulado (SBCE) e voluntário de carbono, Green Bonds, Taxonomia Verde e captação no GCF, BID, IFC e Fundo Amazônia.
Metodologias globais PRiSM/GPM P5 e PMBOK 7, salvaguardas do IFC, inglês técnico executivo e certificações internacionais.
Sugestões ligadas ao conteúdo desta trilha para apoiar sua decisão de matrícula.
R$ 29,90
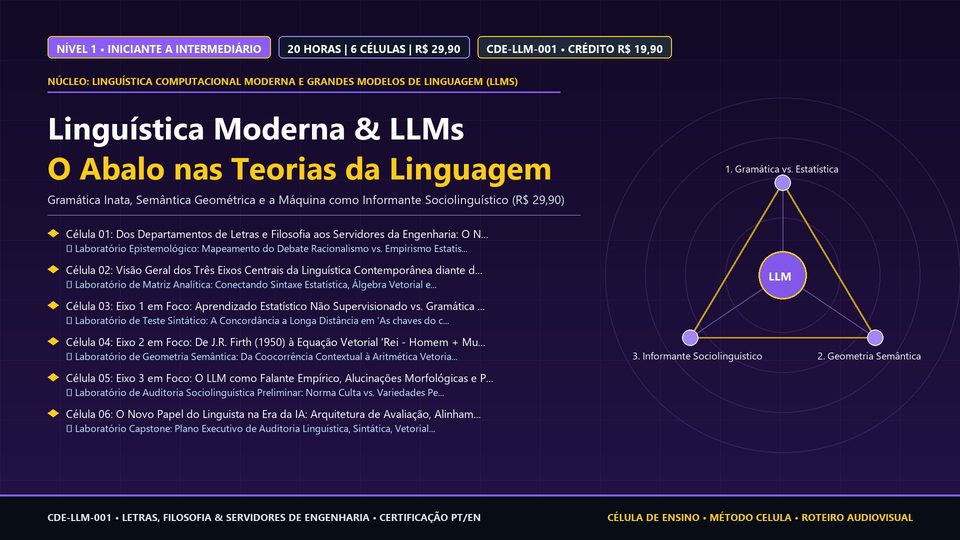
Compreenda por que os Grandes Modelos de Linguagem (LLMs) não são apenas ferramentas tecnológicas, mas um abalo direto nas teorias tradicionais sobre aquisição, estrutura e compreensão da língua em três eixos.
R$ 29,90
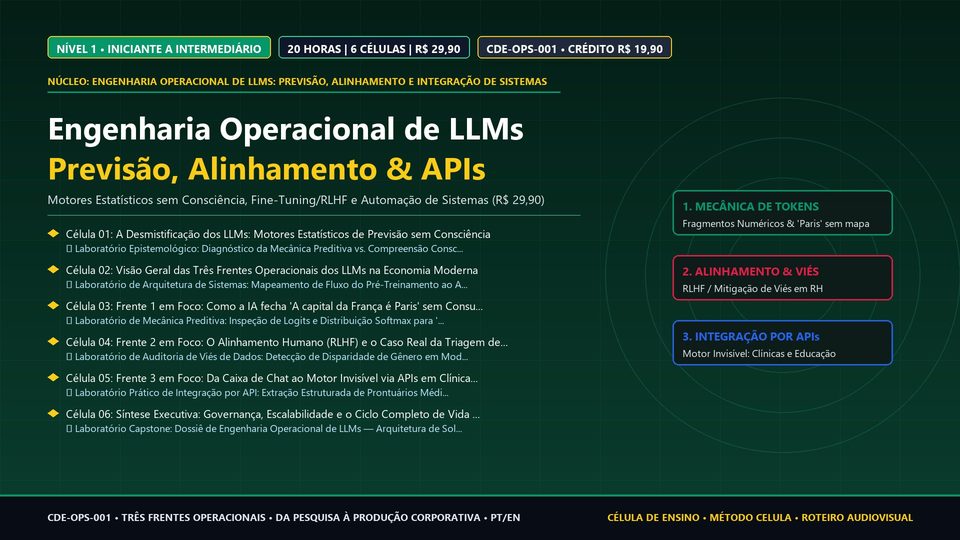
Compreenda por que os LLMs não possuem consciência, mas são motores estatísticos de previsão de texto alimentados por volumes massivos de dados, e domine suas três frentes operacionais: mecânica de tokens, alinhamento RLHF e integração via APIs.
R$ 29,90
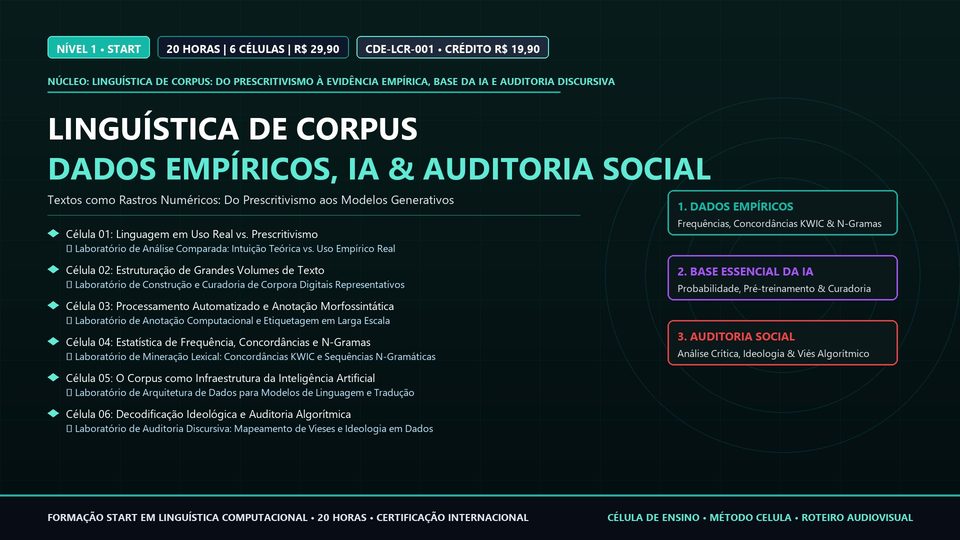
Panorama estruturante da Linguística de Corpus (LC) contemporânea: transição do prescritivismo para a evidência empírica, a linguagem como base estatística da IA e a auditoria de discurso e vieses.
Fundamentos biofísicos da excitabilidade celular, dinâmica de canais iônicos e propagação de potenciais axônicos: 1. Biofísica do Potencial de Repouso da Membrana (RMP): o interior da célula neuronal e muscular em repouso mantém uma diferença de potencial elétrico negativo (aproximadamente -70 mV no neurônio motor e -80 a -90 mV na fibra muscular esquelética) gerada pela distribuição assimétrica de íons entre os meios intracelular (alto K+, baixo Na+ e proteínas aniônicas impermeáveis) e extracelular (alto Na+, alto Cl- e baixo K+); Potencial de Equilíbrio Eletroquímico de Nernst: potencial no qual o fluxo líquido de um íon específico impulsionado pelo gradiente de concentração iguala-se à força elétrica oposta (E_K = -90 mV, E_Na = +60 mV); Equação de Goldman-Hodgkin-Katz (GHK): modela o potencial de repouso global considerando simultaneamente as concentrações e as permeabilidades relativas da membrana (em repouso, a permeabilidade ao K+ é de 20 a 50 vezes superior à do Na+ devido à presença de canais de vazamento constitutivamente abertos de K+ / Kir e K2P); papel eletrogênico essencial da bomba Na+/K+-ATPase (extrusão ativa de 3 Na+ para cada 2 K+ importados consumindo ATP, gerando gradientes de concentração vitais e prevenindo edema celular). 2. A Fisiologia Molecular do Potencial de Ação: ciclo autolimitado e estereotipado de alterações de condutância iônica que obedece à Lei do Tudo-ou-Nada: 1. Despolarização Inicial: estímulo atinge o limiar de disparo (aproximadamente -55 mV), promovendo abertura cooperativa rápida de canais de Na+ dependentes de voltagem (Nav1.6 e Nav1.4), desencadeando influxo massivo regenerativo de íons Na+ (ciclo de feedback positivo de Hodgkin) com inversão de polaridade até o overshoot de aproximadamente +30 mV; 2. Inativação e Repolarização: abertura do portão de inativação peptídico intracelular (ball and chain / motivo IFM) bloqueando os canais de Na+ em milissegundos, concomitante à abertura retardada de canais de K+ retificadores tardios dependentes de voltagem (Kv), promovendo efluxo rápido de K+ que restaura a negatividade da membrana; 3. Hiperpolarização Pós-Potencial (AHP): condutância prolongada de K+ conduz o potencial temporariamente próximo a -90 mV antes do retorno ao estado de repouso; Períodos Refratários: Período Refratário Absoluto (impossibilidade biológica de deflagrar um segundo potencial de ação, decorrente da inativação completa dos canais de Na+, garantindo a propagação unidirecional do impulso e limitando a frequência máxima de disparo) versus Período Refratário Relativo (intervalo onde um estímulo supralimiar mais intenso pode gerar um potencial de amplitude reduzida, pois parte dos canais de Na+ recuperou o estado fechado ativável). 3. Propagação do Impulso Nervoso e Teoria do Cabo: 1. Condução Contínua em Fibras Amielínicas (Fibras C: velocidade lenta de 0,5 a 2 m/s): despolarização contínua ponto a ponto com alto custo metabólico; 2. Condução Saltatória em Fibras Mielinizadas (Fibras A-alfa: velocidade rápida de 70 a 120 m/s): a bainha de mielina (múltiplas camadas lipídicas concêntricas formadas por células de Schwann no SNP ou oligodendrócitos no SNC) atua como isolante elétrico de alta resistência e baixa capacitância de membrana; a corrente elétrica local flui passivamente por eletrotônio pelo axoplasma internodal e salta de um Nodo de Ranvier para o seguinte; nos nodos de Ranvier (espaçamentos desprovidos de mielina a cada 1 a 2 mm), ocorre uma densidade extrema de canais Nav (> 1.000 a 2.000 canais/um² ancorados pela proteína anquirina-G), regenerando o potencial de ação com velocidade fulminante; Teoria do Cabo e Constantes Biofísicas: Constante de Espaço (lambda): distância na qual a voltagem decai para 37% de seu valor inicial (quanto maior o diâmetro axonal e a resistência da membrana, maior lambda e mais rápida a condução); Constante de Tempo (tau): tempo para a voltagem atingir 63% do valor final (quanto menor a capacitância da membrana, menor tau e mais veloz a despolarização); 3. Classificação das Fibras Nervosas (Erlanger-Gasser): Fibras A-alfa (motoneurônios alfa e aferentes primários proprioceptivos de fusos Ia e OTG Ib, 12-20 um, 70-120 m/s), Fibras A-beta (tato e pressão epicrítica, 6-12 um, 30-70 m/s), Fibras A-gama (motoneurônios intrafusais dos fusos, 3-6 um, 15-30 m/s), Fibras A-delta (dor rápida e temperatura, 2-5 um, 12-30 m/s) e Fibras C amielínicas (dor lenta e autonômicas pós-ganglionares, 0,4-1,2 um, 0,5-2 m/s).
10hMecanismos moleculares da sinapse colinérgica, liberação quântica de neurotransmissor, farmacologia clínica e canalopatias autoimunes: 1. Ultraestrutura e Acoplamento Eletroquímico na Junção Neuromuscular (JNM): sinapse química especializada altamente eficiente estabelecida entre o terminal de um motoneurônio alfa e a região central de uma fibra muscular esquelética (placa motora); Componente Pré-Sináptico: o potencial de ação despolariza o botão terminal axonal, promovendo a abertura imediata de Canais de Cálcio Dependentes de Voltagem do tipo P/Q (Cav2.1); o influxo concentrado de Ca2+ eleva a concentração local de micromolar para níveis suficientes para ativar o sensor de cálcio Sinaptotagmina acoplado à membrana das vesículas sinápticas; O Complexo SNARE (Soluble N-ethylmaleimide-sensitive factor Attachment protein Receptor): maquinaria protéica de ancoragem e fusão de membranas formada pelo empacotamento em hélice quaternária da v-SNARE Sinaptobrevina (VAMP-2 na vesícula) com as t-SNAREs Sintaxina-1 e SNAP-25 (na membrana pré-sináptica plasmática); a ativação por cálcio deflagra a fusão rápida das membranas e a exocitose Quântica de Acetilcolina (ACh: cada vesícula contém aproximadamente 5.000 a 10.000 moléculas de ACh que constituem um quantum de neurotransmissor). 2. Dinâmica Pós-Sináptica e o Receptor Nicotínico (nAChR): 1. A Fenda Sináptica Primária e Secundária: a lâmina basal contém a enzima Acetilcolinesterase (AChE) ancorada estrategicamente; a membrana muscular apresenta profundas invaginações (pregas juncionais) com uma densidade espantosa de Receptores Nicotínicos de Acetilcolina (nAChR) nos ápices das pregas (cerca de 10.000 a 20.000 receptores/um² alinhados perfeitamente em frente às zonas ativas pré-sinápticas); 2. Estrutura Molecular do nAChR Muscular Adulto: canal catiônico não seletivo pentamérico composto por cinco subunidades proteicas transmembranares com arranjo estequiométrico alfa-2, beta, épsilon, delta (substituindo a subunidade gama embrionária); a ligação simultânea de DUAS moléculas de ACh (uma em cada interface alfa-delta e alfa-épsilon) induz rotação conformacional que abre o poro iônico central aquoso, permitindo a passagem massiva de cátions (influxo maciço de Na+ impulsionado por forte gradiente eletroquímico e discreto efluxo de K+); 3. Potencial de Placa Motora (EPP): despolarização graduada local do sarcolema na placa motora: em condições fisiológicas, a amplitude do EPP (aproximadamente 40 a 50 mV) supera em muito o limiar de disparo sarcolemar (-55 mV) de canais Nav1.4 presentes na profundidade das pregas juncionais; essa folga de amplitude constitui o 'Fator de Segurança da Transmissão Neuromuscular', garantindo que cada potencial de ação axonal desencadeie obrigatoriamente um potencial de ação muscular e contração; 4. Degradação e Reciclagem: a AChE hidrolisa a acetilcolina em colina e acetato em menos de 1 milissegundo, permitindo a repolarização imediata e prevenindo a dessensibilização dos receptores; a colina é recaptada ativamente para o terminal pré-sináptico pelo transportador de alta afinidade CHT1 acoplado a Na+ para nova síntese de ACh pela colina acetiltransferase (ChAT). 3. Farmacologia, Toxinas e Imunopatologias da Junção Neuromuscular: 1. Bloqueadores Neuromusculares (BNMs): Bloqueadores Não Despolarizantes / Competitivos (Rocurônio, Vecurônio, Pancurônio, D-tubocurarina): antagonistas competitivos puros que competem diretamente com a ACh pelos sítios de ligação do nAChR sem abrir o canal iônico, impedindo a geração do EPP e paralisando a musculatura esquelética; reversíveis por inibidores da AChE (Neostigmina, que eleva a concentração sináptica de ACh) ou encapsuladores seletivos (Sugamadex, que sequestra o rocurônio livre no plasma); Bloqueadores Despolarizantes (Succinilcolina / Suxametônio): agonista potente de ação prolongada que se liga ao nAChR provocando despolarização persistente do sarcolema com fasciculações musculares iniciais seguidas de Bloqueio de Fase I (os canais Nav1.4 adjacentes entram em estado de inativação prolongada, tornando o sarcolema inelegível para novos disparos) e Bloqueio de Fase II (dessensibilização do receptor); 2. Toxinas Biológicas: Toxina Botulínica (produzida por Clostridium botulinum: endopeptidase que cliva seletivamente as proteínas do complexo SNARE [SNAP-25 clivada pelos sorotipos A e E; sinaptobrevina pelo sorotipo B], impedindo a fusão vesicular e bloqueando a liberação de ACh, provocando paralisia flácida profunda); Toxina Tetânica (retrogradamente transportada para a medula, cliva sinaptobrevina em interneurônios inibitórios glicinérgicos de Renshaw, causando paralisia espástica desinibida); e Alfa-Bungarotoxina (antagonista irreversível de nAChR); 3. Doenças Autoimunes da JNM: Miastenia Gravis: doença autoimune com autoanticorpos patogênicos direcionados contra o nAChR (em 85% dos casos) ou contra a tirosina-quinase músculo-específica (MuSK) e LRP4; os anticorpos causam bloqueio estéreo, endocitose acelerada de receptores e destruição mediada por complemento das pregas juncionais com alargamento da fenda sináptica; manifestações clínicas: fraqueza muscular flutuante e fadiga precoce exacerbada pelo esforço e pior ao final do dia (ptose palpebral, diplopia, disfagia e fraqueza de membros); diagnóstico eletrofisiológico padrão-ouro: Teste de Estimulação Repetitiva a 3 Hz em eletromiografia revelando o Fenômeno de Decremento da amplitude do CMAP (> 10% entre o 1º e o 4º estímulo), decorrente do esgotamento rápido dos quanta de ACh em uma placa com fator de segurança deprimido; Teste do Edrofônio (Tensilon: inibidor de AChE de curta ação que reverte temporariamente os sintomas); Síndrome Miastênica de Lambert-Eaton (LEMS): síndrome paraneoplásica (associada a carcinoma de pequenas células do pulmão) mediada por autoanticorpos contra os canais de cálcio pré-sinápticos Cav tipo P/Q; reduz o influxo de Ca2+ pré-sináptico e a liberação de ACh; achado eletrofisiológico patognomônico: Potencial muscular basal muito baixo que sofre Incremento Paradoxal exuberante (> 100% de facilitação) após estimulação em alta frequência (20-50 Hz) ou exercício isométrico voluntário vigoroso por 10 segundos (decorrente do acúmulo intracelular temporário de cálcio residual pré-sináptico).
10hArquitetura sarcomérica, eletromecanotransdução, ciclo quimiomecânico das pontes cruzadas e regulação do cálcio: 1. Ultraestrutura do Sarcômero e Proteínas Miofibrilares: o sarcômero é a unidade funcional básica de contração do músculo esquelético, delimitado entre duas Linhas Z consecutivas (comprimento de repouso de aproximadamente 2,2 a 2,5 micrômetros); Organização das Bandas: Banda A (anisotrópica: faixa escura central contendo filamentos grossos de miosina em toda sua extensão e sobreposição parcial com filamentos finos); Banda I (isotrópica: faixa clara periférica composta exclusivamente por filamentos finos de actina); Zona H (faixa central mais clara da banda A contendo apenas filamentos grossos sem cabeças de miosina); Linha M (ancoragem central dos filamentos grossos mediada por miomesina); Proteínas do Citoesqueleto Sarcomérico: 1. Filamentos Finos: formados pela polimerização de monômeros de actina G em dupla hélice de actina F, associados ao complexo regulatório Troponina-Tropomiosina (a Tropomiosina é uma proteína filamentosa dimérica que recobre fisicamente os sítios de ligação da miosina na actina; o Complexo Troponina é composto por Troponina T [TnT: fixa o complexo à tropomiosina], Troponina I [TnI: inibe o sítio ativo da actina] e Troponina C [TnC: possui 4 sítios de fixação para íons de cálcio]); 2. Filamentos Grossos: formados por aproximadamente 300 moléculas de Miosina II dispostas cauda com cauda em arranjo bipolar; cada molécula de miosina possui duas cadeias pesadas terminando em cabeças globulares biquadradas com atividade enzimática ATPase e sítio de ligação para actina, estabilizadas por duas cadeias leves regulatórias e essenciais; 3. Proteínas Gigantes Estruturais: Titina (a maior proteína do corpo humano, com peso molecular de 3,8 MDa: ancora o filamento grosso da Linha Z à Linha M, atuando como mola molecular viscoelástica responsável pela tensão passiva e mantendo a centralização dos filamentos no sarcômero); Nebulina (régua molecular que determina o comprimento exato dos filamentos de actina) e Complexo Distrofina-Glicoproteínas (conecta o citoesqueleto de actina intracelular à laminina da matriz extracelular; sua ausência funcional por mutações no gene DMD provoca as Distrofias Musculares de Duchenne e Becker por fragilidade sarcolemar e necrose muscular). 2. A Tríade Sarcolemar e a Eletromecanotransdução: 1. A Tríade Muscular Esquelética: estrutura microscópica especializada composta por uma invaginação tubular profunda do sarcolema (Túbulo T) flanqueada simetricamente por duas Cisternas Terminais do Retículo Sarcoplasmático (RS) localizadas na junção das bandas A e I; 2. O Mecanismo Mecânico de Liberação de Cálcio: a propagação do potencial de ação sarcolemar penetra profundamente nos túbulos T e ativa os Receptores de Di-hidropiridina (DHPR / canal de cálcio dependente de voltagem Cav1.1); no músculo esquelético, o DHPR atua primariamente como Sensor de Voltagem e NÃO como canal de influxo de cálcio externo (diferente do miocárdio, o músculo esquelético contrai perfeitamente em meio extracelular livre de cálcio); a alteração conformacional dependente de voltagem do DHPR puxa mecanicamente, através de alça citoplasmática direta acoplada, o pé de abertura do Receptor de Rianodina do Tipo 1 (RyR1) inserido na membrana das cisternas do RS; a abertura mecânica do RyR1 promove a liberação explosiva de Ca2+ armazenado no RS em direção ao mioplasma, elevando a concentração citoplasmática livre de cálcio de menos de 0,1 uM para mais de 10 uM em poucos milissegundos. 3. A Teoria dos Filamentos Deslizantes e o Ciclo Quimiomecânico das Pontes Cruzadas (Andrew Huxley, 1954): 1. Ativação por Cálcio: o Ca2+ liberado liga-se com alta afinidade à Troponina C (TnC), promovendo alteração alostérica que remove o efeito inibitório da TnI e desloca a Tropomiosina para o interior do sulco da actina, desobstruindo os sítios de ligação da miosina; 2. Ciclo Quimiomecânico de 4 Etapas: Etapa 1: Ligação Actina-Miosina: a cabeça de miosina energizada contendo ADP e fosfato inorgânico (Pi) liga-se perpendicularmente ao sítio exposto da actina, formando a ponte cruzada de baixa afinidade; Etapa 2: O Golpe de Força (Power Stroke): a ligação à actina induz a liberação do Pi, deflagrando uma grande mudança conformacional na cabeça da miosina que gira cerca de 45 graus (de 90° para 45°), tracionando o filamento fino de actina em direção ao centro do sarcômero por aproximadamente 10 a 12 nanômetros (gerando força mecânica e encurtamento da banda I e zona H, enquanto a banda A permanece estritamente constante em comprimento); em seguida, o ADP é liberado; Etapa 3: Desprendimento da Ponte Cruzada: uma nova molécula de ATP liga-se ao sítio nucleotídico da cabeça de miosina, induzindo perda imediata da afinidade da miosina pela actina e desprendimento da ponte cruzada (alerta fisiopatológico: na ausência de ATP intracelular pós-morte ou isquemia crítica, as cabeças de miosina permanecem irreversivelmente travadas à actina no estado de 'rigor mortis'); Etapa 4: Rearmamento da Cabeça: a ATPase intrínseca da miosina hidrolisa o ATP em ADP e Pi (ambos retidos na cabeça), rearmando a cabeça globular na conformação esticada de alta energia em ângulo de 90 graus, pronta para um novo ciclo se o cálcio persistir elevado; 3. Relaxamento Muscular Ativo: a cessação dos potenciais de ação permite o fechamento do RyR1; a bomba de Cálcio-ATPase do Retículo Sarco/Endoplasmático (SERCA1 em fibras rápidas e SERCA2 em fibras lentas) recapta ativamente o Ca2+ do sarcoplasma de volta para o interior das cisternas do RS contra um gradiente químico mil vezes maior, consumindo 1 ATP para cada 2 íons Ca2+ transportados; no interior do RS, o cálcio é tamponado reversivelmente pela proteína Calsequestrina; com a queda de [Ca2+]i para < 0,1 uM, a troponina C perde o cálcio e a tropomiosina retorna à posição bloqueadora, permitindo que as forças elásticas da titina restaurem o comprimento sarcomérico de repouso; 4. Hipertermia Maligna: emergência anestésica com base farmacogenética por mutações hereditárias autossômicas dominantes no gene RYR1; a exposição a anestésicos inalatórios voláteis (halotano, isoflurano) ou ao bloqueador despolarizante succinilcolina provoca abertura descontrolada e irreversível do canal RyR1, desencadeando efluxo maciço e sustentado de Ca2+ para o sarcoplasma; ativação muscular metabólica extrema e descontrolada: consumo frenético de ATP pelas bombas SERCA e cabeças de miosina, hipertermia fulminante (> 42°C), rigidez muscular generalizada, taquicardia severa, hipercapnia intratável, acidose lática maciça e rabdomiólise com mioglobinúria; tratamento farmacológico de emergência: descontinuação imediata do agente desencadeante e administração intravenosa imediata de Dantroleno Sódico (bloqueador alostérico específico do canal RyR1 que interrompe o efluxo de cálcio e encerra a crise hipermetabólica).
10hGraduação da força muscular, biofísica dos motoneurônios espinhais e especialização morfo-metabólica das fibras: 1. O Conceito Fisiológico de Unidade Motora (Sir Charles Sherrington, 1925): a menor entidade estrutural e funcional de controle neuromuscular; compreende um único motoneurônio alfa (localizado na coluna cinzenta anterior da medula espinhal ou em núcleos motores de nervos cranianos), seu axônio mielinizado e todas as fibras musculares esqueléticas por ele inervadas; Princípio da Homogeneidade da Unidade Motora: todas as fibras musculares pertencentes a uma mesma unidade motora possuem rigorosamente as mesmíssimas propriedades morfológicas, metabólicas, contráteis e isoformas de miosina (são homogêneas entre si), distribuindo-se de forma dispersa em mosaico por todo o músculo para gerar tensão homogênea; Relação de Inervação: número de fibras musculares inervadas por um único axônio motor: músculos dedicados a movimentos de altíssima precisão e controle refinado possuem relações de inervação extremamente baixas (ex.: músculos extraoculares com 5 a 10 fibras/motoneurônio e laringe); músculos posturais e de potência possuem relações de inervação altíssimas (ex.: gastrocnêmio e glúteo máximo com 1.000 a 2.000 fibras/motoneurônio). 2. O Princípio do Tamanho de Henneman (Elwood Henneman, 1957): base biofísica universal do recrutamento ordenado e previsível das unidades motoras: 1. Mecanismo Físico Baseado na Lei de Ohm (V = I x R): motoneurônios alfa pequenos possuem corpos celulares menores, menor área superficial de membrana e menor número total de canais iônicos, o que lhes confere uma alta Resistência de Entrada Elétrica (R_in); motoneurônios grandes possuem corpos celulares volumosos, dendritos extensos e baixa Resistência de Entrada; 2. Ordem Estrita de Recrutamento: quando o comando motor voluntário descendente ou reflexo gera uma corrente sináptica excitatória (I_syn) sobre o pool de motoneurônios, a mesma corrente produz uma despolarização muito maior (V) nos motoneurônios pequenos de alta resistência, fazendo com que atinjam o limiar de disparo primeiro; à medida que a demanda de força muscular se eleva progressivamente, motoneurônios progressivamente maiores vão atingindo seus limiares de disparo; Ordem Funcional de Recrutamento: Unidades Tipo S (Lentas) primeiro $ ightarrow$ Unidades Tipo FR (Rápidas Resistentes à Fadiga) intermediárias $ ightarrow$ Unidades Tipo FF (Rápidas Fatigáveis) por último; esse princípio garante gradação ultraprecisa de força em baixas intensidades, economia energética máxima e recrutamento automático de unidades explosivas somente quando necessário. 3. Tipagem e Características Morfo-Funcionais das Fibras Musculares Esqueléticas: 1. Fibras do Tipo I (Fibras Lentas / Vermelhas / Oxidativas / Unidades S): velocidade de contração lenta (tempo de contração de 80 a 100 ms), isoforma de cadeia pesada de miosina lenta (MHC-I / MyHC-beta/slow) com baixa atividade enzimática da ATPase da miosina; abundância extrema de mitocôndrias volumosas com densas cristas, alta concentração de mioglobina intracelular (cor vermelha escura) e densa rede capilar perivascular (4 a 6 capilares por fibra); metabolismo estritamente aeróbio oxidativo com enzimas do ciclo de Krebs (citrato sintase) e beta-oxidação; baixíssima fatigabilidade, alta eficiência na sustentação postural crônica e contrações submáximas prolongadas (músculo sóleo, eretor da espinha); 2. Fibras do Tipo IIa (Fibras Rápidas Oxidativas-Glicolíticas / Intermediárias / Unidades FR): velocidade de contração rápida (tempo de contração de 30 a 50 ms), isoforma MHC-IIa; possuem perfil misto com alta capacidade aeróbia associada a grande capacidade glicolítica anaeróbia; resistência moderada à fadiga e desenvolvimento de força intermediária; 3. Fibras do Tipo IIx (Fibras Rápidas Glicolíticas / Brancas / Unidades FF; historicamente denominadas Tipo IIb em humanos): velocidade de contração ultrarrápida (tempo de contração de 15 a 25 ms), isoforma MHC-IIx com altíssima atividade de ATPase de miosina e cinética acelerada da SERCA1; baixíssimo teor mitocondrial e de mioglobina, escassa rede capilar; grande reservatório de glicogênio e fosfocreatina com alta atividade enzimática glicolítica (fosfofrutoquinase e lactato desidrogenase - LDH-M); altíssima produção de força máxima e potência pico, porém com exaustão precoce e extrema fatigabilidade em segundos (músculos gastrocnêmio, tríceps braquial e peitoral). 4. Mecanismos Integrados de Modulação da Força Muscular: 1. Recrutamento Espacial (Recrutamento de Unidades Motoras): acréscimo numérico ordenado de unidades motoras ativas segundo o princípio de Henneman; em músculos de precisão distal (ex.: adutor do polegar), todas as unidades motoras são recrutadas até 50% da contração voluntária máxima (MVC); em músculos proximais de membros (ex.: bíceps e quadríceps), o recrutamento de novas unidades estende-se até 85% a 90% da MVC; 2. Recrutamento Temporal (Codificação de Frequência / Rate Coding): variação na taxa de disparo de potenciais de ação de motoneurônios já recrutados (de 5 a 10 Hz no limiar de recrutamento até 30 a 60 Hz em contrações tetânicas máximas e até 100 Hz em disparos duplos iniciais / doublets balísticos); 3. Somação Temporal e Fusão Tetânica: a duração do potencial de ação sarcolemar é de apenas 1 a 2 ms, enquanto o abalo mecânico muscular (twitch) dura de 30 a 100 ms; potenciais de ação subsequentes disparados antes do relaxamento completo promovem somação mecânica de cálcio residual ligando-se à troponina, gerando Tétano Incompleto ondulante e culminando em Tétano Completo Fundido (onde a força contínua atinge de 3 a 5 vezes a tensão de um abalo isolado).
10hPropriedades mecânicas intrínsecas do músculo esquelético, biofísica contrátil e interações dinâmicas: 1. A Relação Força-Comprimento Sarcomérica (Gordon, Huxley & Julian, 1966): a capacidade de geração de tensão ativa isométrica de um músculo é função direta da sobreposição geométrica entre os filamentos finos de actina e os filamentos grossos de miosina dentro de cada sarcômero: 1. Comprimento Ótimo Sarcomérico (L0: entre 2,0 e 2,25 micrômetros no músculo humano): todos os filamentos de actina sobrepõem-se exatamente sobre a totalidade das pontes cruzadas disponíveis da miosina, permitindo a formação do número máximo de pontes ativas e geração de 100% da tensão isométrica máxima (P0); 2. Ramo Descendente (comprimentos sarcoméricos > 2,25 um): à medida que o sarcômero é alongado passivamente além de L0, a área de sobreposição diminui linearmente; quando o sarcômero atinge 3,65 um, cessa completamente a sobreposição e a força ativa cai a zero; 3. Ramo Ascendente (comprimentos sarcoméricos < 2,0 um): o encurtamento excessivo promove a colisão dos filamentos finos opostos no centro do sarcômero na linha M e compressão das extremidades dos filamentos grossos contra as Linhas Z, gerando resistência elástica estérica que deprime a produção de força; 4. Curva de Tensão Total: soma da Tensão Ativa (pontes cruzadas ativadas por cálcio) com a Tensão Passiva (gerada pela mola molecular da Titina intracelular e pelo tecido conjuntivo fascial em paralelo — epimísio, perimísio e endomísio — que resistem ao estiramento extremo em comprimentos elevados). 2. A Relação Força-Velocidade de A.V. Hill (1938): relação mecânica fundamental para contrações concêntricas modelada pela equação hiperbólica clássica (P + a)(V + b) = constante: 1. Ações Concêntricas (Encurtamento Ativo): existe uma relação inversa estrita entre a carga externa oposta e a velocidade de encurtamento muscular; sob carga nula (P = 0), o músculo encurta em sua Velocidade Máxima (Vmax, determinada pela taxa intrínseca de hidrólise de ATP pela ATPase da miosina e rápida cinética de desprendimento das pontes); sob carga isométrica máxima (P0), a velocidade de movimento é zero; em altas velocidades de encurtamento, a força cai drasticamente porque as pontes cruzadas dispõem de menos tempo físico para ligar-se à actina e realizar o golpe de força antes que o filamento fino deslize para longe; 2. Curva de Potência Mecânica Muscular (Potência = Força x Velocidade): o produto entre a curva hiperbólica de força e a velocidade gera uma curva parabólica com vértice nítido: a Potência Muscular Máxima (Pico de Potência) é gerada em velocidades e forças intermediárias, ocorrendo exatamente a aproximadamente 30% a 40% da Vmax e 30% da P0 (base biomecânica para treinamento de potência e saltos); 3. Ações Excêntricas (Alongamento Muscular Sob Tensão): quando o músculo é forçado a se alongar enquanto ativado por uma carga externa que supera sua força isométrica máxima: a força gerada excede a força isométrica máxima em até 140% a 160% (Força Supramáxima); Mecanismos Moleculares da Alta Força Excêntrica: as cabeças de miosina ligadas à actina são tracionadas mecanicamente no sentido inverso de sua rotação natural, desprendendo-se por cisalhamento mecânico sem consumir ATP adicional; ativação da rigidez da Titina (que se liga ao filamento de actina na presença de Ca2+, encurtando sua mola elástica livre e acumulando enorme energia elástica passiva); menor custo metabólico por unidade de força gerada, acompanhado de maior propensão a estresse mecânico ultraestrutural sarcomérico com desorganização da linha Z e microlesões (dor muscular de início tardio - DMIT). 3. O Ciclo Alongamento-Encurtamento (CAE / Stretch-Shortening Cycle): ação biomecânica natural composta por uma fase excêntrica rápida (alongamento prévio) imediatamente sucedida por uma fase de transição (amortização) e uma fase concêntrica explosiva: Mecanismos de Potencialização: 1. Acúmulo e restituição de energia potencial elástica passiva na mola molecular da titina e nas estruturas tendíneas em série (tendões); 2. Potencialização Reflexa Neuromuscular (o estiramento súbito estimula os fusos neuromusculares disparando o reflexo miotático que soma força na fase concêntrica inicial); 3. Pré-ativação e aumento do estado de acoplamento de pontes cruzadas; dependência crítica da fase de amortização: se o tempo de transição entre o estiramento excêntrico e a contração concêntrica for prolongado (> 200 ms), a energia elástica é completamente dissipada na forma de calor metabólico e o efeito potencializador é perdido (base da pliometria moderna).
10hEtiologia multifatorial da fadiga neuromuscular, biomarcadores eletromiográficos e mecanismos de adaptação funcional e degenerativa: 1. Taxonomia e Fisiopatologia da Fadiga Neuromuscular: definida formalmente como qualquer redução induzida pelo exercício na capacidade máxima do músculo de gerar força ou potência, independente de a tarefa poder ou não ser continuada; Componentes Etiológicos: 1. Fadiga Central: diminuição progressiva do drive neural descendente transmitido a partir do córtex motor primário e medula espinhal para o pool de motoneurônios alfa; mecanismos neuroquímicos e fisiológicos: aumento nos níveis de serotonina e citocinas inflamatórias no SNC, feedback inibitório aferente das fibras musculares sensoriais dos Grupos III e IV (metaborreceptores que detectam isquemia, acúmulo de lactato, bradicinina e prótons H+, projetando para a medula e inibindo reflexamente o drive motor supraespinhal para proteger os tecidos contra danos catastróficos); Método Padrão-Ouro de Mensuração da Fadiga Central: Técnica do Estímulo Elétrico Sobreposto (Interpolated Twitch Technique - ITT): aplicação de estímulo elétrico supramáximo no tronco nervoso motor durante uma Contração Voluntária Máxima (MVC); em repouso pleno, o estímulo elétrico sobreposto não gera força adicional (ativação voluntária de 100%); à medida que a fadiga central se instala, o estímulo elétrico sobreposto recruta unidades motoras que o córtex não conseguiu ativar voluntariamente, gerando um 'abalo sobreposto' cuja amplitude relativa quantifica a magnitude da inibição central (queda do nível de ativação voluntária); 2. Fadiga Periférica: falha bioquímica intrínseca localizada distalmente à placa motora no próprio músculo: Acúmulo de Fosfato Inorgânico (Pi: o principal vilão bioquímico da fadiga periférica: precipita com o Ca2+ no retículo sarcoplasmático formando fosfato de cálcio insolúvel que impede a liberação de cálcio pelo RyR1, reduz a sensibilidade da Troponina C ao Ca2+ e atua diretamente sobre as pontes cruzadas bloqueando a transição do estado de baixa para alta força); Acidose e Prótons H+ (antigamente apontados como causa única, atuam inibindo enzimaticamente a fosfofrutoquinase e a SERCA); Acúmulo de K+ no lúmen estreito dos Túbulos T (despolarização crônica que inativa canais de Na+ e bloqueia a propagação do potencial de ação sarcolemar); Depleção de Glicogênio Muscular em cisternas do RS desestabilizando o RyR1. 2. Avaliação Eletromiográfica da Fadiga Neuromuscular: o sinal da Eletromiografia de Superfície (sEMG) reflete a somação espaço-temporal de todos os potenciais de ação das unidades motoras ativas sob os eletrodos: 1. Comportamento do Sinal durante Contração Isométrica Sustentada Fadigante: a amplitude temporal (RMS - Root Mean Square) inicialmente se eleva (decorrente do recrutamento adicional de novas unidades motoras e sincronização compensatória para manter a força-alvo exigida); 2. Análise Espectral por Transformada Rápida de Fourier (FFT): à medida que o músculo fatiga, o espectro de frequências sofre um deslocamento progressivo para a esquerda (queda monotônica da Frequência Mediana - MDF e da Frequência Média - MNF): a queda da MDF é o biomarcador biofísico mais robusto de fadiga periférica sarcolemar, provocada pela desaceleração da velocidade de condução do potencial de ação ao longo da membrana muscular (sarcolemma conduction velocity - CV) devido ao acúmulo de metabólitos ácidos e alteração de condutância iônica. 3. Plasticidade Neuromuscular e Adaptações ao Treinamento de Força vs. Desuso: 1. Adaptações Neurais Iniciais (Primeiras 4 a 8 Semanas de Treinamento): o impressionante aumento de força observado nas fases iniciais do treino de força ocorre quase que exclusivamente sem aumento detectável de massa muscular: aumento do drive neural descendente, aumento da taxa máxima de disparo inicial dos motoneurônios (rate coding / presença de doublets de disparo com intervalo interpulso < 10 ms), maior sincronização de unidades motoras e redução expressiva da coativação antagonista e da inibição reflexa autogênica dos órgãos tendinosos de Golgi; 2. Adaptações Estruturais e Hipertrofia Sarcomérica: após 6 a 8 semanas, a síntese proteica cumulativa mediada pela mecanotransdução (ativação da via de sinalização intracelular FAK/mTORC1 e fosforilação da p70S6K) supera a degradação proteica (via ubiquitina-proteassoma); Hipertrofia Sarcomérica: acréscimo paralelo de novos miofilamentos de actina e miosina com expansão do diâmetro das miofibrilas; aumento da Área de Secção Transversa Fisiológica (PCSA) e aumento do Ângulo de Penação dos fascículos musculares (permitindo acomodar mais sarcômeros em paralelo por unidade de volume); proliferação e fusão de Células Satélites musculares para fornecimento de novos mionúcleos (domínio mionuclear); transição fenotípica de isoformas de miosina (as fibras IIx transitam para o fenótipo mais eficiente e oxidativo IIa com o treinamento resistido crônico); 3. Adaptações Neuromusculares ao Desuso, Imobilização e Envelhecimento: a imobilização em gesso ou o repouso no leito provoca atrofia muscular rápida (com perda de até 1% a 1,5% da massa muscular e 3% de força por dia), degradação preferencial de proteínas contráteis e resistência anabólica; Envelhecimento e Sarcopenia: perda involuntária progressiva de massa muscular, qualidade e força (dinapenia) decorrente de Morte Apoptótica de Motoneurônios Alfa na medula espinhal; desinervação preferencial das fibras rápidas do Tipo II: os motoneurônios lentos sobreviventes enviam brotamentos axonais colaterais (sprouting) para resgatar as fibras desinervadas, gerando o fenômeno de Agrupamento de Fibras do Tipo I (Fiber Type Grouping) com perda irreversível da capacidade de geração rápida de potência muscular; infiltração gordurosa intermuscular e intramuscular (mioesteatose) e aumento do tecido conjuntivo fibroso, elevando drasticamente a fragilidade motora e o risco de quedas.
10h